肿瘤中的炎症生物分子标志物
多种炎症生物分子标志物也与肿瘤相关。其中广为人知的是C反应蛋白(CRP),其生成受促炎细胞因子调控。CRP水平在健康人中很低,但会随炎症迅速升高,并与多种肿瘤的进展和生存率下降相关,例如食管癌、胃癌、结直肠癌、肝癌、胰腺癌和卵巢癌。
总体而言,CRP浓度越高,罹患癌症的风险越大。例如,诊断前的CRP水平与结直肠癌的发病率及乳腺癌风险相关。不仅如此,对于结直肠癌,诊断前的CRP浓度还与癌症死亡率相关。
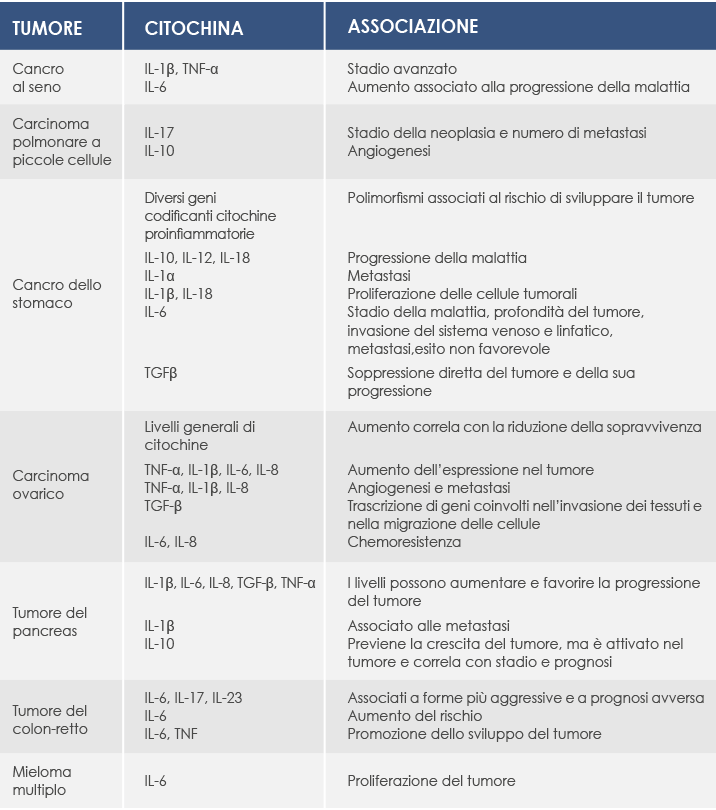
至于细胞因子,乳腺癌就是它们参与其中的一个例子。它们可由炎症细胞产生,也可由肿瘤细胞及周围环境中的细胞产生。白细胞介素1β(IL-1β)水平升高与病情较晚期相关,白细胞介素6(IL-6)水平升高似乎会促进疾病进展。总体而言,肿瘤相关巨噬细胞(TAMs)产生肿瘤坏死因子α(TNF-α)等促炎细胞因子,可能有助于增强其促进肿瘤发展的能力。血液中的TNF-α浓度本身也与处于较晚期的肿瘤相关。
事实上,在各种细胞因子中,TNF是促进多种肿瘤发展的一个特别重要的因子。它在炎症反应的初期产生,在维持慢性炎症中起关键作用,并参与肿瘤生长、血管生成、组织重塑和转移灶的形成。
出现转移灶时,白细胞介素17(IL-17)也会升高。与白细胞介素23(IL-23)一起,IL-17的表达已在结肠、卵巢、肺、乳腺、胃、皮肤、肝脏以及头颈部的肿瘤中被观察到。在小细胞肺癌中,它还与肿瘤分期和转移灶数量相关;因此人们认为它可能成为一种新的预后标志物。
另一种在小细胞肺癌中强效诱导血管生成的因子是白细胞介素10(IL-10),而在胃癌中它似乎通过抑制抗肿瘤免疫而促进疾病进展。同样在胃癌中,白细胞介素12(IL-12)和白细胞介素18(IL-18)可能具有与IL-10类似的作用,而白细胞介素1α(IL-1α)与转移相关,IL-1β和IL-18刺激肿瘤细胞增殖,IL-6则与疾病分期、肿瘤浸润深度、淋巴系统和静脉系统的侵犯、转移以及不良结局相关。最后,转化生长因子β(TGFβ)似乎在直接抑制肿瘤及其进展方面发挥复杂的作用(可能源于其免疫抑制和抗炎特性),这种作用可能取决于疾病的分期和所涉及的细胞类型。
肿瘤中的炎症生物分子标志物
慢性低度炎症不伴有急性炎症的典型症状(肿胀、疼痛、发红和发热),但幸运的是,如今已有许多生物分子标志物,通过一次简单的血液分析就能识别它的存在。其中包括多种细胞因子,即炎症过程的介质,如TNF-α、白细胞介素1、6和12以及干扰素,还有C反应蛋白(CRP),这是肝脏为响应促炎细胞因子的存在而产生的一种蛋白质。
促炎细胞因子
促炎细胞因子由活化的炎症细胞产生,受多种机制调控。其中最重要的机制之一是SOCS(Suppressor Of Cytokine Signaling,细胞因子信号转导抑制因子)的活性,这种蛋白质通过作用于转录因子,如NF-kB(炎症过程的关键调节因子)和STAT(信号转导和转录激活因子)1和3,促进炎症细胞的进一步活化。
NF-kB被促炎刺激激活后,会引起多个具有促炎作用或与固有免疫相关的基因协同表达,其中包括IL-1、4和6以及TNF-α。这些基因中的许多也会被作用于STAT1(它对IFN-γ的作用至关重要,并促进NF-kB诱导的程序性细胞死亡)和STAT3(它在被IL-10激活时,则通过抑制NF-kB的活性来促进细胞增殖)的促炎刺激所激活。
粒细胞-巨噬细胞
集落刺激因子(GM-CSF)
粒细胞-巨噬细胞集落刺激因子(GM-CSF)是一种细胞因子,能够刺激骨髓中血细胞的生成,其中包括属于粒细胞和巨噬细胞类的白细胞。然而,与CSF超家族的其他成员相比,它在支持这些细胞方面的作用并不突出,尤其是与它作为炎症介质的作用相比。
它的表达与多种炎症现象相关。例如,它在多发性硬化症患者的脑脊液中被激活;此外,在发炎的组织中也会被激活,如受皮肤反应影响的皮肤和受类风湿关节炎影响的关节,并且在脂多糖(LPS,一种细菌来源的毒素)的作用下迅速而显著地升高。
它由多种细胞产生。通常,与类风湿关节炎等自身免疫性慢性炎症性疾病相关的GM-CSF,是T淋巴细胞在一种或多种白细胞介素(IL-2、IL-7,或IL-1与IL-23的组合)刺激后合成的。不过,在多发性硬化症中,B淋巴细胞也会产生它。
然而,由GM-CSF促成的慢性炎症所伴随的组织损伤,并非由淋巴细胞直接造成。更可能的是,这种细胞因子能够将T淋巴细胞与巨噬细胞和粒细胞等细胞联系起来,从而引发一些效应,在慢性炎症中,这些效应最终可能损伤原本健康的组织,例如活性氧的产生。
使升高的GM-CSF水平恢复正常可能有助于对抗慢性炎症。这种方法已在类风湿关节炎患者中显示出潜在的有效性。在多发性硬化症中开展的试验表明,没有出现意外的副作用。
肿瘤坏死因子α(TNF-α)是一种促炎细胞因子,对维持全身性低度炎症至关重要。例如在创伤或感染时,它的作用不可或缺;然而,当其水平持续偏高时,就会形成慢性炎症状态,从而损伤组织。具体而言,TNF-α可能导致血管功能失调,并促成高血压和动脉粥样硬化的发生。
在看似健康的个体中,它与血压相关:其生成的持续增加,即使水平很低,也会促进血管收缩,从而诱发高血压。具体而言,这种细胞因子会损害依赖内皮(血管内壁的衬里上皮)的血管舒张过程,它降低这一现象的主要介质一氧化氮(NO)的生物利用度,一方面减少其生成,另一方面加快其清除。
不仅如此,TNF-α还在血管水平介导胰岛素抵抗,促成糖尿病和心血管代谢综合征中普遍存在的内皮功能障碍。此外,它还在肾脏和心肌水平调节血压。
同样在血管水平,TNF-α还刺激活性氧的产生,并诱导黏附分子的表达,这些分子介导炎症细胞向血管壁内的募集和迁移,从而促进动脉粥样硬化的过程。同时,它通过促进与内皮相关的平滑肌细胞的增殖和迁移,诱导形成促动脉粥样硬化的条件。
最后,它会降低心肌细胞的收缩力,诱导其肥大,并在体外促进其程序性死亡。
白细胞介素6(IL-6)是一种能够刺激与感染和组织损伤相关的急性炎症的细胞因子。它的生成起着警报和防御信号的作用;然而,当其活性持续偏高时,炎症反应就会转为慢性,随之而来的是各种可能的危险。不仅如此,IL-6的持续生成还与自身免疫现象有关。
IL-6生成后,通过血液循环到达肝脏,在那里迅速生成多种与炎症急性期相关的蛋白质,如C反应蛋白
(CRP)和血清淀粉样蛋白A(SAA)。如果它的浓度长期保持在高位,SAA会诱导淀粉样纤维沉积,这是多种慢性炎症性疾病的严重并发症,会导致器官的逐渐退化。
此外,IL-6还会降低血液中铁和锌的水平,导致与慢性炎症相关的贫血以及铁和锌缺乏。它被激活后的后果还不止于此;其中包括:
- 从骨髓中释放血小板,这是炎症严重程度的一个标志;
- 对淋巴细胞分化的调节,导致免疫耐受受损,而免疫耐受与慢性炎症性疾病和自身免疫性疾病的发生有关;
- 免疫球蛋白的过度生成和自身抗体的合成;
- 骨吸收和骨质疏松;
- 血管生成和血管通透性的增加,这是炎症性病变的两个病理特征,例如与类风湿关节炎相关的病变;
- 角质形成细胞的增殖和真皮成纤维细胞中胶原蛋白的生成,与系统性硬化症相关。
多种炎症性或自身免疫性疾病,以及各种形式的肿瘤,都与IL-6的异常生成相关。动物模型研究表明,阻断它的作用可以抑制这些疾病的发生或发展。
白细胞介素(IL)17家族是由6个不同成员组成的一类促炎细胞因子。其中,白细胞介素17A(IL-17A)在多种慢性疾病中大量产生,如类风湿关节炎、多发性硬化症、炎症性肠病和银屑病;它的受体(IL-17RA)表达于多种类型的细胞和组织。
IL-17家族的细胞因子可由免疫系统的多种细胞产生,但其主要来源是一种特定类型的T淋巴细胞,称为Th17。
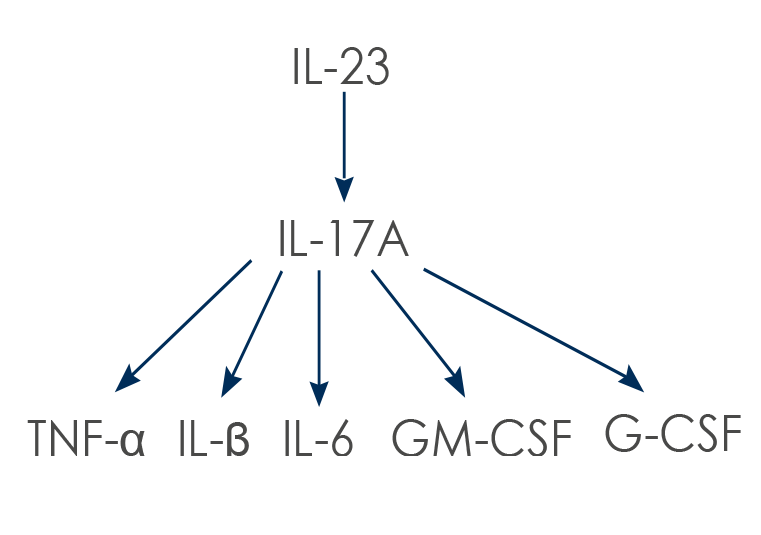
Th17淋巴细胞受IL-23刺激;由此产生的IL-17会增加其他细胞因子的合成,并增加另一类免疫细胞,即中性粒细胞的迁移。
IL-17A和IL-17F(其结构与IL-17A非常相似,并与之共用相同的受体)也作用于其他细胞(如巨噬细胞、成纤维细胞、成骨细胞、软骨细胞和内皮细胞)。它们的作用会导致其他促炎细胞因子的合成:肿瘤坏死因子α(TNF-α)、IL-1β、IL-6、粒细胞-巨噬细胞集落刺激因子(GM-CSF)和粒细胞集落刺激因子(G-CSF)。
IL-17家族的成员在抵御细菌和真菌感染中起关键作用。然而,它们的过度活跃与多种炎症性疾病相关,如银屑病、银屑病关节炎、类风湿关节炎和强直性脊柱炎。通过刺激能够降解软骨的酶的表达,IL-17促成软骨的破坏;通过激活破骨细胞(分解骨骼的细胞),它促进骨组织的降解。研究还表明,产生IL-17A的Th17淋巴细胞同样参与血管炎症;更广泛地说,Th17淋巴细胞产生的炎症分子会促进慢性炎症。
在这一过程中,IL-23的刺激会增强Th17淋巴细胞的致病性,导致IL-17以及其他细胞因子的产生,如干扰素γ(IFN-γ)、IL-22和GM-CSF。IL-17单独作用时往往活性不高;不过,它可以与这些分子以及参与炎症过程的其他分子,如TNF-α和IL-1β协同作用,导致其他炎症介质,如IL-6和IL-8的生成增加。
例如,IL-17可以稳定由TNF-α激活的mRNA表达,并诱导这种细胞因子受体的表达,从而放大由其存在所引发的反应。IL-17A和IL-17F还可以与IL-1、IL-6、G-CSF和基质金属蛋白酶等分子协同诱导促炎基因的表达。
在血管炎症中,IL-17A同样会放大由既有损伤诱发的炎症反应,是维持而非诱发炎症。在内皮细胞(血管内壁的衬里上皮)中,IL-17A与TNF-α的联合作用会诱导促炎、促凝血和促血栓形成的状态。IL-17A维持血小板的高反应性,放大这种反应,并参与血管生成,而血管生成对慢性炎症以及与自身免疫性疾病相关的组织重塑至关重要。最后,在急性冠脉综合征中,这种细胞因子促进血小板的功能,在急性心肌梗死中则与血栓的形成相关。
鉴于其作用,IL-17被认为是一个令人感兴趣的治疗靶点。抑制它(以及它的受体)已被证明是治疗银屑病的有效方法,目前有多种分子正在研究中,它们的作用正是阻断IL-17所参与的过程。临床前研究和临床阶段的研究都为靶向IL-17以应对炎症性或自身免疫性疾病的方法的合理性提供了有力证据。
C反应蛋白(CRP)同样被视为炎症标志物。它的基础水平在个体之间差异相当大,而这种个体间差异有35-40%取决于遗传因素。不过,与炎症过程相关的升高是毋庸置疑的,可使其水平增加多达千倍;在严重的组织损伤时,包括肿瘤进展可能引起的损伤,它在短短24-72小时内就从约1 μg/ml升至500 μg/ml以上。
CRP主要由肝细胞产生。导致其合成的刺激是促炎细胞因子的增加,如白细胞介素(IL)6、肿瘤坏死因子α(TNF-α)和IL-1;其中,IL-6是诱导CRP表达所必需的,尽管并不充分。在没有炎症时,肝细胞的内质网会缓慢地释放它;而在炎症细胞因子水平升高之后,它的分泌会迅速增加。
除肝细胞外,平滑肌细胞、内皮细胞、巨噬细胞、淋巴细胞和脂肪细胞也可以合成CRP。炎症刺激消除后,它的水平应当下降,在18-20小时内呈指数式降低。
CRP水平长期以来一直被用作感染和心血管事件的标志物。具体而言,血清CRP浓度升高是在其他方面无症状的个体中发生心血管疾病的有力独立指标。此外,它们还与动脉粥样硬化、充血性心力衰竭、心房颤动、心肌炎、主动脉瓣问题和心脏移植的预后相关。
不仅如此:在其他与炎症相关的疾病中,例如类风湿关节炎,CRP的表达同样升高。此外,它的基础水平还可能因许多其他因素而改变,包括年龄、吸烟、体重、血脂水平、血压以及口服激素替代疗法。当引起其变化的是某种疾病时,能够依靠不作用于潜在病因的药物来降低它的情况非常少。
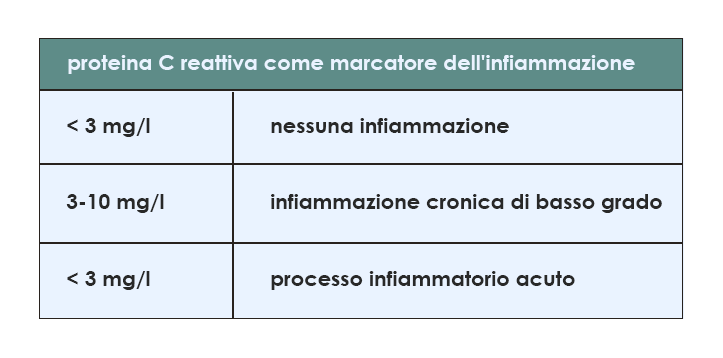
在与心血管风险的关联中,CRP的升高幅度远小于对急性炎症的反应中所能测得的幅度;风险被视为显著的阈值水平定为3 mg/l。更广泛地说,当用作慢性低度炎症存在的指标时,CRP水平在3至10 mg/l之间被视为升高,西方世界有相当一部分人群的水平处于这一浓度(例如,高达30%的北美居民)。而高于10 mg/l时,则怀疑存在急性炎症过程。
不过,CRP不只是一种标志物;这种蛋白质在炎症过程中还发挥着积极作用。一些数据表明,例如,它通过与受损的细胞膜结合,并与补体系统(固有免疫防御的关键组成部分)的蛋白质相互作用,参与炎症反应,尤其是在动脉粥样硬化病变处。在那里,它诱导与免疫细胞的募集和黏附直接相关的基因表达;此外,还观察到它参与巨噬细胞摄取低密度脂蛋白(与心血管风险升高相关的胆固醇形式)的机制。
CRP还可以刺激促进细胞凋亡的细胞因子(IL-1β和TNF-α)以及活性氧的产生。细胞凋亡也可能发生在动脉粥样硬化斑块内部,促使斑块破裂,而CRP也可以在与冠状动脉相关的平滑肌细胞中诱导细胞凋亡。
最后,在体外实验中,CRP通过减弱一氧化氮(NO)的生成,显著减少了血管生成、细胞迁移和类毛细血管结构的形成。同样是在与一氧化氮减少相关的过程中,CRP通过血管收缩、白细胞黏附和炎症促进动脉粥样硬化。此外,CRP还影响IL-6、IL-8和单核细胞趋化蛋白-1(MCP-1)的水平,后者是一种参与白细胞迁移和浸润的细胞因子。
选择性清除细胞因子
将炎症介质的水平维持在警戒限值以下,有助于降低与炎症相关疾病发生的风险因素。Bioscience Institute提供一套集成系统,用于读取和选择性清除健康人血液中过量的细胞因子。这些人没有慢性疾病的症状,也没有癌症发生前的基因改变,但对这类人群,可以识别那些易于引发这些改变和症状的生理状态或病前状态,并降低其风险。
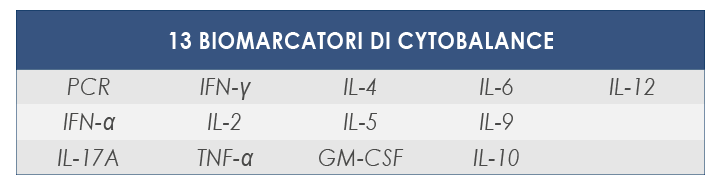
通过对血液中细胞因子水平的定期监测,可以追踪一种或多种炎症介质的升高,并通过体外血液净化系统将其清除。净化后的血液回输后,会再次测量细胞因子水平,并重复这一操作周期,直到测得的数值降至关注阈值以下。
采血和细胞因子的清除可以是一个连续的过程,也可以分开进行。在后一种情况下,如果净化后的血液回输后测得的细胞因子水平仍然过高,则开始新一轮采血和净化。
一轮清除完成后,下一次分析会根据起始时测得的细胞因子水平、个人病史以及该领域专家确定的其他因素来安排。
科学内容由 Bioscience Institute 科学委员会审核。 · 最近更新
本页信息仅供科普参考,不能替代医生的诊疗意见。